martes, 17 de febrero de 2015

Ácidos nucleicos.

Los ácidos nucleicos fueron descubiertos por Miescher en 1869.
Son niopolimeros formados por subunidades estructurales o monómeros, llamados nucleótidos.
Estos nucleótidos están formados a su vez por la unión de un nucleósido y un grupo fosfato.

   · Los nucleósidos están compuestos por la unión de una base nitrogenada y una pentosa mediante un enlace N-glucosídico. 
     -Las bases nitrogenadas son moléculas cíclicas que contienen en sus anillos atomos de nitrógeno. Hay dos clases:
      1. Purinas: unidas por un anillo hexagonal unido a uno pentagonal, tienen átomos de nitrógeno en las posiciones 1,3,7 y 9, dentro de esta clase hay dos tipos la adenina y la guanina.
      2. Pirimidinas: formadas por un anillo hexagonal con nitrógeno en las posiciones 1 y 3, dentro de esta clase hay tres bases , la citosina, la timina y el uracilo.
Diagram of 2 purines: 
Adenine (A) and Guanine (G), both used in the formation of DNA &
RNA and 3 Pyrimidines: Cytosine (C) used in the formation of both
DNA & RAN, Thymine (T) used in the formation of  DNA only and
Uracil (U) used in the formation of RNA only.
     -Las pentosas son la desoxirribosa y la ribosa, la desoxirribosa no tiene grupo hidroxilo en su carbono 2. Dependiendo de las pentosas se pueden formar ribonucleósidos y desoxiribonucleósidos, teniendo en cuenta que la timina nunca está presente en el ARN y el Uracilo nunca está presente en el ADN, se forman en total ocho nucleósidos diferentes.
AN004

 Los nucleótidos se forman cuando se une un grupo fosfato mediante enlace éster al carbono 5 de la pentosa. Hay que tener en cuenta que los ácidos nucleicos son polímeros de nucleótidos monofosfato, pero que en el citoplasma los nucleótidos se pueden encontrar di- o trifosfatados, de hecho los sustratos de las polimerasas son los nucleótidos trifosfatados que al reaccionar desprenden dos de sus fosfatos y la energía que liberan es utilizada para realizar la reacción.


ADN:
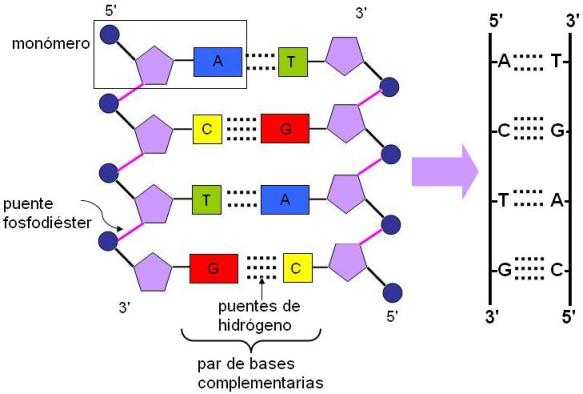
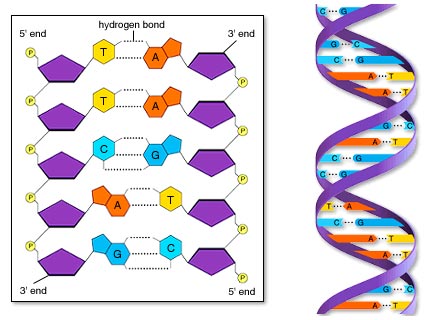
  • Estructura: Está formado por la unión de muchos desoxirribonucleótidos. La mayoría de las moléculas de ADN poseen dos cadenas antiparalelas ( una 5´-3´y la otra 3´-5´) unidas entre sí mediante las bases nitrogenadas, por medio de puentes de hidrógeno, la timina y la adenina se unen por dos puentes de hidrógeno, la guanina y la citosina mediante tres. Las bases se encuentran perpendiculares a la dirección de la hélice y se complementan siempre la guanina con la citosina y la timina con la Adenina, cada par está formado por tanto, por una purina y una pirimidina,. De esta manera se mantiene estable la anchura de la cadena, que al parecer es una de las señales que reconocen las enzimas para detectar errores en la duplicación.  Las premisas con que contaban Watson y Crick para realizar su modelo de doble hélice del ADN, son las siguientes:
  • ·En 1930 Kossel y Phoebus establecieron que el ADN era un polí­mero de nucleótidos.
    ·A finales de los años 40 Chargaff determina lo que se conoce como regla de Chargaff, la proporción de adenina es igual a la de timina y la de guanina igual a la de citosina.
    ·Además tení­an imágenes de Rosalind Franklin obtenidas por difracción de rayos X que inducí­an a pensar que la molécula de ADN era helicoidal 


  • El ADN es el portador de la informacion genética, se puede decir por tanto, que los genes están compuestos por ADN

ARN:
  • El ARN a diferencia del ADN, es un polímero monocatenario de ribonucleótidos, nunca se encuentra timina y sí uracilo. En el ARNt se pueden encontrar además, bases derivadas de las cuatro principales. El ARN se forma por transcripción en el núcleo pero tiene que cumplir su función en el citoplasma por lo que se puede encontrar en ambos, el ADN sólo se localiza en el núcleo, en los cloroplastos y en las mitocondrias.

    Hay tres tipos principales de ARN, que se diferencian en su función:
- ARN mensajero (ARNm), son cadenas largas de unos 3000 nucleótidos que son leídas en los ribosomas para formar proteínas con la información que llevan
-ARN ribosómico (ARNr) es un ARN estructural, forma, unido a proteínas, la estructura de los ribosomas, hay diferentes fragmentos que se diferencian en su velocidad de sedimentación, todos los fragmentos se forman en el nucléolo. La función principal del nucléolo es la transcripción del ARN ribosomal, y el posterior procesamiento y ensamblaje de los pre-componentes que formarán los ribosomas. El ARNr forma las subunidades de los ribosomas por separado, y es por esto, por lo que pueden salir al exterior del núcleo de la célula, y una vez fuera, unirse. Mientras están unidos, no pueden volver a entrar al núcleo ya que el tamaño de los poros de la membrana de este no lo permiten, esto sirve para la protección del contenido del núcleo. Estos ARN pueden formar horquillas para complementarse las bases dentro de la misma cadena, en este caso el Uracilo es complementario de la Adenina.
-ARN transferente (ARNt) son cadenas cortas muy homogéneas en cuanto a forma, su función es unirse a los aminoácidos específicamente y transportarlos hasta el ribosoma para que se unan a la cadena polipeptídica que se esté formando. Los ARN tienen forma de hoja de trébol, la cadena tiene tres bucles formados por complementariedad entre fragmentos de la misma cadena. Los ARNt son muy específicos, las aminoacilARNtsintetasas reconocen a los ARNt y los unen con su aminoácido correspondiente, cada uno tiene una región, la correspondiente al peciolo de la hoja de trébol (amarillo en la imagen), a la que se une el aminoácido y otra en la parte opuesta de la molécula, que se llama brazo anticodón (azul en la imágen), que posee una secuencia de tres bases (gris) que son específicas para ese ARNt y para su aminoácido correspondiente; esta es la clave del mecanismo de la traducción, más adelante hablaremos del código genético.
Biología Molecular


ARN heterogeneo nuclear, es un tipo de ARN de fragmentos cortos que se encuentra en el núcleo y que se supone que son los restos del ARNm después de que este haya sido madurado y se hayan eliminado los intrones
  • . Es la molécula que dirige las etapas intermedias de la síntesis proteica; el ADN no puede actuar solo, y se vale del ARN para transferir esta información vital durante la síntesis de proteínas.


http://www.profesorenlinea.cl/Ciencias/AcidosNucleicos.htm
ENLACE INTERESANTE: http://www.educaplus.org/play-46-Bases-nitrogenadas.HTML
http://bioquimica7.wikispaces.com/Pentosas
 http://www.biologia.arizona.edu/biochemistry/problem_sets/large_molecules/06t.HTML
http://www.um.es/molecula/anucl02.htm
http://www.genomasur.com/BCH/BCH_libro/capitulo_03.htm
http://es.wikipedia.org/wiki/%C3%81cido_ribonucleico
https://adnestructurayfunciones.files.wordpress.com/2009/09/enlaces_hidrogeno.jpg

viernes, 13 de febrero de 2015

YOUTUBE

Aquí os dejo el enlace de varios videos que me han parecido interesantes:
https://www.youtube.com/watch?v=bm2s_W8I1Zw
https://www.youtube.com/watch?v=OtuFarj8fzM

CATABOLISMO GLÚCIDOS.

GLUCOLISIS.
Alpha-D-Glucopyranose.svg \Longrightarrow Pyruvat.svg + Pyruvat.svg
Glucosa + 2NAD+ + 2ADP + 2Pi => 2Piruvato + 2NADH + 2ATP + 2H+ + 2H2O


La glucolisis es una vía catabólica a través de la cual oxidan diferentes moléculas formadas por glúcidos y obtienen energía en forma de ATP. Se realiza en el hialoplasma. Es común en todos los seres vivos.
Es la primera ruta de degradación de los glúcidos que apareció en la evolución.
En esta vía se producen 9 reacciones que se pueden dividir en dos grandes grupos:
  • Primera fase, activación de la hexosa, con gasto de ATP: consiste en transformar una molécula de glucosa en dos moléculas de gliceraldehído (una molécula de baja energía) mediante el uso de 2 ATP. Esto permite duplicar los resultados de la segunda fase de obtención energética
'Glucólisis'
  • Segunda fase, obtención de energía en forma de ATP:  el gliceraldehído se transforma en un compuesto de alta energía, cuya hidrólisis genera una molécula de ATP, y como se generaron 2 moléculas de gliceraldehído, se obtienen en realidad dos moléculas de ATP. Esta obtención de energía se logra mediante el acoplamiento de una reacción fuertemente exergónica después de una levemente endergónica. Este acoplamiento ocurre una vez más en esta fase, generando dos moléculas de piruvato. De esta manera, en la segunda fase se obtienen 4 moléculas de ATP.
'Glucólisis'
Las 9 reacciones son las siguientes:
 1- La glucosa se transforma en glucosa 6 fosfato, consumiéndose una molécula de ATP, la enzima que lo realiza es la Glucoquinasa o la hexoquinasa, se encuentra en el hígado y actúa cuando tras la digestión hay concentraciones elevadas de glucosa en sangre, la hexoquinasa se encuentra en todas las células. Esta reacción es poco reversible en condiciones celulares.
'Glucólisis'
 2-  La glucosa-6-P se isomeriza en fructosa-6-P mediante la glocusa-fosfato-isomerasa.
'Glucólisis'
 3- Fosforilación de la fructosa-6-P, consumiéndose otra molecula de ATP y produciendo fructosa-1,6-difosfato.
'Glucólisis'
 4- Escisión de la fructosa-1,6-dP en dihidroxiacetona-P y gliceraldehido-3-P. Catalizada por la fructosa-difosfato-aldosa.
'Glucólisis'
 5- isomerización de la dihidroxicetona-P en gliceraldehido-3-P, por la triosa-fosfato-isomerasa.
'Glucólisis'
Hasta aquí la primera fase.
Segunda fase:
 6- Oxidación del gliceraldehido-3-P que se transforma en un ácido, el 3-fosfogliceril-fosfato uniéndose a un fosfato inorgánica, al unirse se desprenden en la reacción dos electrones y dos protones que son absorbidos por un transportador de electrones, el NADP que se reduce transformándose en NADPH2. Inmediatamente este fosfato se desprende y es absorbido por una molecula de ADP que forma ATP, quedando como producto final el 3-fosfoglicerato.
'Glucólisis'
 7- Isomerización del 3-fosfoglicerato por la fosfogliceromutasa.
'Glucólisis'
 8- Deshidratación del 2-fosfoglicerato para formar 2-fosfoenol-piruvato.
'Glucólisis'
 9. Transferencia del fosfato del fosfoenolpirivato al ADP con formación de ATP.
'Glucólisis'


DESCARBOXILACIÓN Y OXIDACIÓN DEL PIRUVATO
La glucolisis acaba con la formación del piruvato, en los organismos aerobios el piruvato se oxida en la mitocondria. Es una ruta irreversible mediante la cual el piruvato es oxidado con liberación de CO2 para formar Acetil CoA y NADPH2.

CICLO DE KREBS
Se produce en la matriz mitocondrial.
El acetil-CoA es el principal precursor del ciclo. El citrato (6 Carbonos) se obtiene en cada ciclo por condensación de un acetil-CoA con una molécula de oxaloacelato. El citrato produce en cada ciclo una molécula de oxaloacetato y dos CO2, por lo que el balance neto del ciclo es:

Acetil-CoA + 3 NAD+ + FAD + GDP + Pi + 2 H2O → CoA-SH + 3 (NADH + H+) + FADH2 + GTP + 2 CO2

Los dos carbonos del Acetil-CoA son oxidados a CO2, y la energía que estaba acumulada es liberada en forma de energía química: GTP y poder reductor: NADH y FADH2 son coenzimas capaces de acumular la energía en forma de poder reductor para su conversión en energía química en la fosforilación oxidativa.
El FADH2 de la succinato deshidrogenasa, al no poder desprenderse de la enzima, debe oxidarse nuevamente. El FADH2 cede sus dos hidrógenos a la coenzima Q, que se reduce y abandona la enzima.
 Todo este proceso se produce en 8 reacciones consecutivas.

MoléculaEnzimaTipo de reacciónReactivos/
Coenzimas
Productos/
Coenzima
I. Citrato1. AconitasaDeshidrataciónH2O
II. cis-Aconitato[Nota 1]2. AconitasaHidrataciónH2O
III. Isocitrato3. Isocitrato deshidrogenasaOxidaciónNAD+NADH + H+
IV. Oxalosuccinato4. Isocitrato deshidrogenasaDescarboxilación
V. α-cetoglutarato5. α-cetoglutarato
deshidrogenasa
Descarboxilación oxidativaNAD+ +
CoA-SH
NADH + H+
+ CO2
VI. Succinil-CoA6. Succinil CoA sintetasaHidrólisisGDP
+ Pi
GTP +
CoA-SH
VII. Succinato7. Succinato deshidrogenasaOxidaciónFADFADH2
VIII. Fumarato8. Fumarato HidratasaAdición (H2O)H2O
IX. L-Malato9. Malato deshidrogenasaOxidaciónNAD+NADH + H+
X. Oxalacetato10. Citrato sintasaCondensación


Para calcular la energia que se obtiene de la glucosa se pueden establecer cuatro instancias en su 
degradacion: glucolisis, decarboxilacion oxidativa del piruvato, ciclo de Krebs y cadena respiratoria. 


http://www.fagro.edu.uy/~bioquimica/docencia/material%20nivelacion/GLUCOLISIS.pdf
http://es.wikipedia.org/wiki/Gluc%C3%B3lisis


ATP

El Adenosin trifosfato es la moneda energética del metabolismo. Es principalmente esta molécula la que intercambia la energía metabólica en todos los organismos vivos. La energía liberada en reacciones exergónicas se acumula en los enlaces ésteres fosfato del ATP y es utilizada por hidrólisis en las reacciones endergónicas. También es el precursor de una serie de coenzimas esenciales como el NAD+ o la coenzima A. El ATP es uno de los cuatro monómeros utilizados en la síntesis de ARN celular. Además, es una coenzima de transferencia de grupos fosfato que se enlaza de manera no-covalente a las enzimas quinasas. Es obtenido en las células de diferentes maneras:
  • Fosforilaciones a nivel de sustrato: el ATP se forma cuando una molecula fosfatada transfiere su fosfato al ADP.
  • Fosforilaciones acopladas a reacciones: en una reacción se libera la suficiente energía como para que un ADP y un fosfato inorgánico puedan unirse.
Síntesis de ATP
  • Fosforilaciones acopladas al transporte de electrones: se produce ATP acoplando a reacciones de oxidorreducción localizadas físicamente en membranas. El transporte de electrones provoca un gradiente electroquímico protónico, a través de la membrana que hace funcionar una bomba de protones semejante a la bomba de NA+/K+ pero en sentido inverso, produciendo ATP en lugar de gastarlo.


Metabolismo celular


El metabolismo es el cojunto de todas las reacciones bioquímicas y procesos físico-químicos que se producen en la células. Lo podemos dividir en dos procesos:
  • Catabolismo: las reacciones catabólicas liberan energía, por tanto, son exergónicas..Estas incluyen degradación y oxidación de moléculas de alimento, así como reacciones que retienen la energía del Sol. Estas diferentes formas de catabolismo dependen de reacciones de reducción-oxidación que involucran transferencia de electrones. En los animales, estas reacciones conllevan la degradación de moléculas orgánicas complejas a otras más simples, como dióxido de carbono y agua. En organismos fotosintéticos como plantas y cianobacterias, estas transferencias de electrones no liberan energía, pero son usadas como un medio para almacenar energía solar El propósito de estas reacciones catabólicas proveer energía, poder reductor y componentes necesitados por reacciones anabólicas.
  • Anabolismo: las reacciones anabólicas gastan energía, por tanto, son endergónicas. La energía que utilizan para formar moléculas orgánicas complejas con gran entalpia en sus enlaces a partir de moléculas más sencillas.

Una vez sabemos diferenciar el concepto de catabolismo y anabolismo ahora debemos saber diferenciar los conceptos de autotrofismo y heterotrofismo.

  • Los seres Autótrofos son  organismos capaces de sintetizar todas las sustancias esenciales para sus mutualismos a partir de sustancias inorgánicas, de manera que para su nutrición no necesitan de otros seres vivos. El término autógrafo procede del griego y significa “que se alimenta por sí mismo”. La mayoría son fotoautótrofos, consiguen su energía absorbiendo luz, que utilizan para extraer electrones de una molécula inorgánica reducida. Otros son quimioautótrofos, extraen los electrones de la oxidación directa de moléculas inorgánicas como el amoníaco, nitrito, etc.
  • Los seres Heterótrofos son aquellos que deben alimentarse con las sustancias orgánicas sintetizadas por otros organismos, bien autótrofos o heterótrofos a su vez. Por tanto, dependen de otros seres vivos.
Esquema de los procesos metabólicos generales


http://es.wikipedia.org/wiki/Metabolismo
https://cienciasnaturales6.wordpress.com/periodo-ii/
http://platea.pntic.mec.es/~cmarti3/bio/celula/2ESO/metcelular.htm
http://cmapspublic2.ihmc.us/rid=1H9SBCCXT-105477G-MYN/catabolismo%202.cmap
http://www.biologia.edu.ar/metabolismo/met1.htm


martes, 10 de febrero de 2015

Enzimas

Para hablar de enzimas primero hay que saber qué es un catalizador.

Un catalizador es una molécula que ayuda a las reacciones a activarse y una vez activada, a que estas se produzcan de una manera mas rápida. De esta manera disminuyen la energía que se gastan en dichas reacciones.

En las reacciones inorgánicas los catalizadores son inespecíficos, pero en la orgánicas los catalizadores pasan a llamarse enzimas y son muy selectivas.
Las enzimas son complejos llamados holoenzimas formados por una molécula proteica llamada apoenzima y otra no proteica que se llama coenzima. Ambas inactivas en la célula si no están unidas formando la holoenzima.
Para que las enzimas realicen su faena tienen que unirse a un sustrato. Se propuso el modelo inducido donde el sustrato al entrar en contacto con el centro activo de la enzima interacciona con él y esta se transforma hasta acoplarse al sustrato formando el complejo enzima-sustrato, y una vez haya ayudado a este sustrato a realizar la reacción que tenia que realizar tendremos los productos y la enzima, que no se destruye.
 
 
La velocidad de las reacciones catalizadas está controlada por la cantidad de enzima y por la cantidad de sustrato. Al variar la concentración de sustrato para la misma concentración de enzima se observó que la velocidad aumentaba casi directamente proporcional al aumento del sustrato, hasta llegar a un punto en que ese incremento era menor y si continuábamos aumentando el sustrato el incremento en la velocidad es nulo, la enzima no puede trabajar más deprisa, este fenómeno se denomina saturación. Fue observado por Michaelis y Menten. La hipótesis de Michaelis-Menten es que la catálisis se produce en dos fases. Cada una de estas fases tiene una constante de equilibrio.


Como ya he mencionado antes, las enzimas tienen especificidad, y esta se puede clasificar en:
  • ABSOLUTA: una enzima solo actúa sobre un sustrato.
  • COMPLETA DE GRUPO: una enzima solo actúa para un enlace y las moléculas que se unen mediante este enlace.
  • RELATIVA DE CLASE: tienen mayor actividad sobre un grupo de moléculas pero puede actuar en otros.
  • ESTEREOQUÍMICA: solo actúa en los isómeros de clase L o D, pero no en ambos a la vez.
 
 
Existen varios tipos de enzimas:
  • OXIDORREDUCTASAS: catalizan oxidorreductores, producen energía.
  • TRANSFERASAS: transfieren radicales de una sustrato a otro.
  • HIDROLASAS: catalizan la ruptura de un sustrato introduciendo una molécula de agua.
  • LIASAS: se encargan de romper dobles enlaces.
  • ISOMERASAS: catalizan isomeraciones
  • LIPASAS: forman enlaces por separación de ATP.
 
En algunas ocasiones hay varias enzimas diferentes para una misma reacción, localizadas en diferentes partes del organismo, a este conjunto de enzimas se le llama isoenzimas.
 
No hay que olvidar que hay factores que afectan a la velocidad de las enzimas:
  • La temperatura
  • El pH
  • Los inhibidores biológicos
  • Venenos biológicos
  • Etc...


sábado, 7 de febrero de 2015

Pràctica 2 a l'Universitat.

La segona pràctica que ferem a l'Universitat de Biología era una pràctica tipus "CSI" pero amb egagròpiles de òliba.
Consistia en desfer-les i observar el que havien menjat les òlibes i una vegada ho haguerem vist mirar si el rendiment del que menjaven els proporcionava la suficient eneegia i aquesta no es gastava per a atrapar a les preses.
Açó es pot calcular mitjaçant una equació i altres dades que disposaven la gent de l'Universitat.
Varem descubrir que el que més menjen aquestes aus són ratolins, que no són molt costosos de atrapar i els proporcionen suficient energía, el segon animal que més cacen són musaranyes.
A continuació ficaré unes imatges del que trobarem a les egagròpiles.